Documento de trabajo vivo · Versión 1.0
Circuitos bioeléctricos del sistema nervioso central humano
Corriente de membrana, biopotenciales de órganos, vías sensoriales, habla interna y campos bioelectromagnéticos medidos
25 páginas de fuente · 10 ecuaciones · 10 figuras · 18 tablas · 28 entradas bibliográficas
Resumen
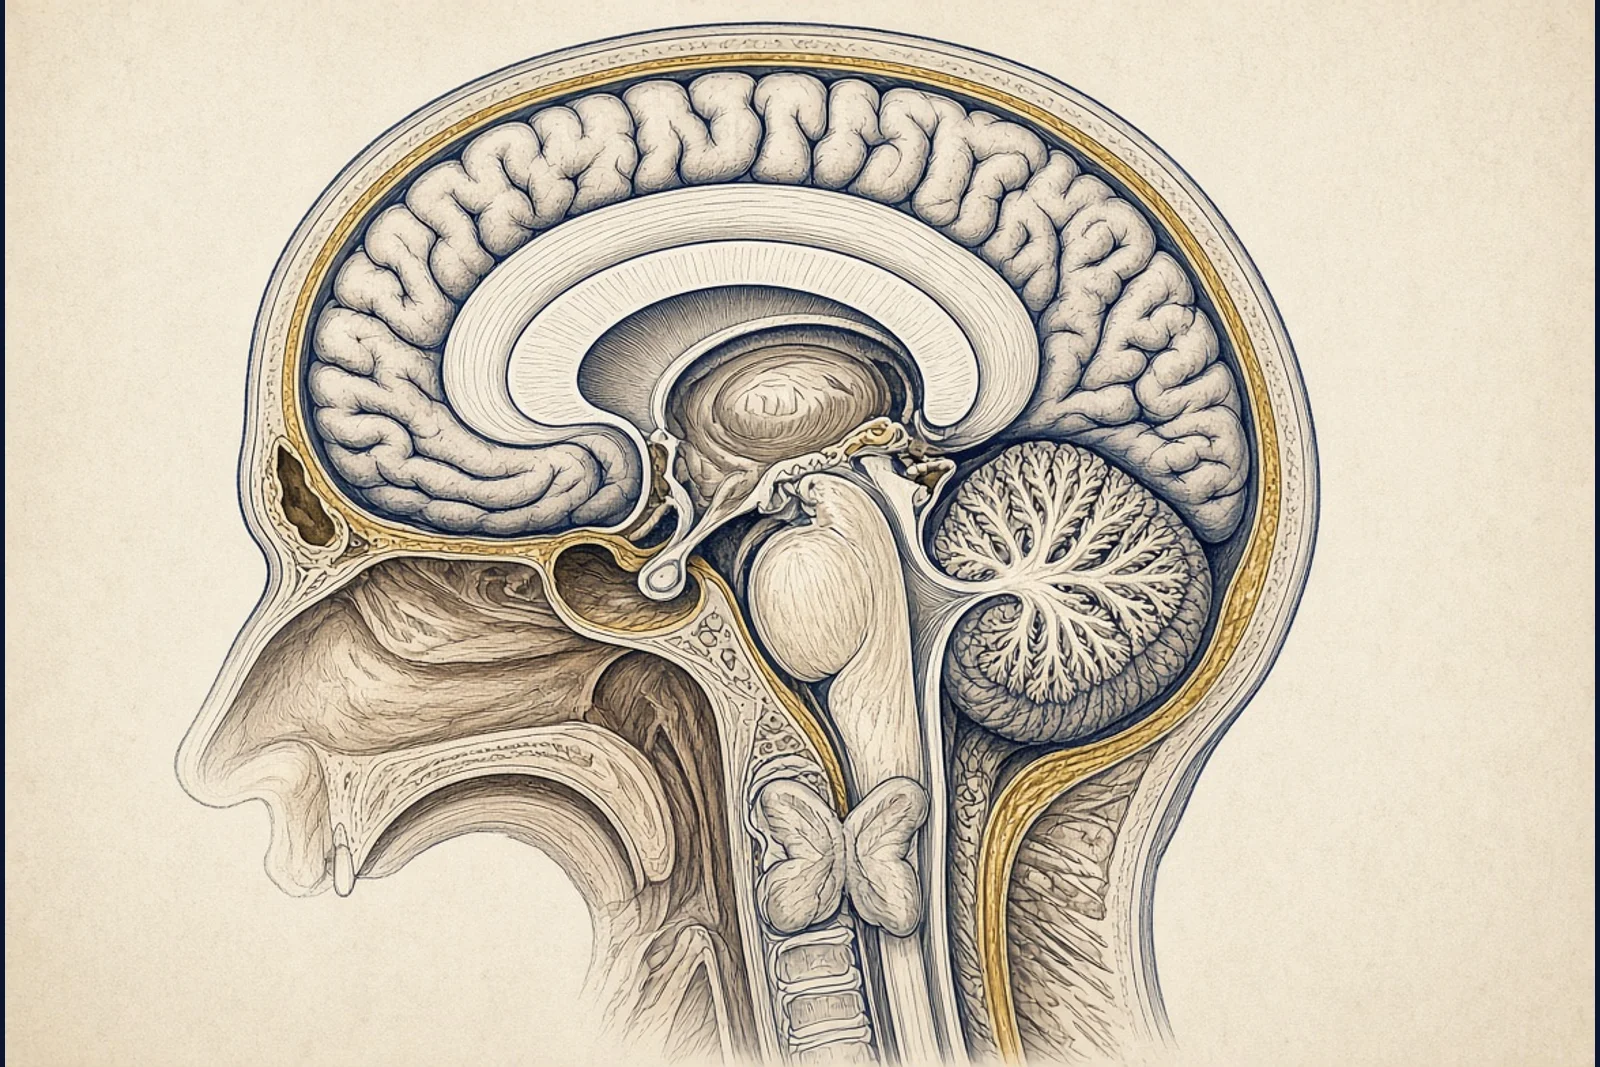
Esta monografía reconstruye el sistema nervioso central humano como un conjunto de circuitos bioeléctricos mensurables y no como una metáfora de frecuencias ocultas. Desde las relaciones de Nernst y Goldman-Hodgkin-Katz hasta la corriente de membrana de Hodgkin-Huxley y la teoría del cable, el argumento sigue la carga iónica cuando sale del axón, se suma en las columnas corticales y aparece en el cuero cabelludo como electroencefalografía y fuera de la cabeza como magnetoencefalografía. Los circuitos paralelos del corazón, el músculo esquelético, el intestino, los ojos, los nervios y la piel se inventarian por amplitud y ancho de banda tal como aparecen realmente en los registros clínicos. Los cinco sentidos clásicos se tratan como cadenas del transductor a la corteza. El pensamiento silencioso no se trata como una facultad extrasensorial; se trata como habla interna e imágenes verbales auditivas cuya descarga corolaria desde la corteza motora ventral del habla llega a la corteza auditiva antes de la articulación. Los campos de Maxwell generados por esas corrientes son reales y débiles. Las afirmaciones de que cada órgano emite una frecuencia de aura única más allá de estos biopotenciales medidos están separadas del registro de laboratorio. El mandato de la casa es cuantitativo: cada relación rectora es una placa recopilada con una Tabla Interactiva de Elementos Cuantitativos. Las preguntas de investigación, la historiografía, el método, la síntesis y los problemas abiertos siguen las notas-bibliografía de Chicago en orden de primera aparición.
Navegador de lectura
Cita de esta publicación
Web Development Corporation. Circuitos bioeléctricos del sistema nervioso central humano. Documento de trabajo vivo 1.0. 2026-09-19. https://digitalmarketingco.org/es/libros-blancos/circuitos-bioelectricos-sistema-nervioso-central-humano-wca-folio.
I. Introducción y preguntas de investigación
El sistema nervioso central humano es una máquina electroquímica cuyo evento elemental es una corriente iónica transmembrana. Esa corriente carga una bicapa lipídica, abre y cierra los poros de las proteínas y, cuando muchas células actúan juntas, genera un voltaje en el cuero cabelludo y una inducción magnética fuera del cráneo. La presente monografía trata esos hechos como circuitos: caminos cerrados de carga con fuentes definidas, conductancias, constantes de tiempo y firmas de campo lejano. No los trata como un catálogo de frecuencias de órganos ocultos.123
Ocho preguntas de investigación organizan el trabajo. En primer lugar, ¿qué relaciones de equilibrio y no equilibrio fijan el potencial de reposo de una neurona típica? En segundo lugar, ¿qué sistema diferencial explica el potencial de acción y su propagación? En tercer lugar, ¿cómo se divide anatómicamente el sistema nervioso central para que esos eventos de membrana se conviertan en vías? En cuarto lugar, ¿qué órganos fuera del cerebro producen campos magnéticos o de superficie que los laboratorios realmente registran y en qué ventanas de amplitud y frecuencia? Quinto, ¿cómo convierten los cinco sentidos clásicos la energía del estímulo en la misma moneda iónica? En sexto lugar, ¿cuál es la mejor explicación de laboratorio del pensamiento intracraneal silencioso en la medida en que involucra la corteza auditiva, en contraposición a un sexto sentido extrasensorial? En séptimo lugar, ¿qué campos de Maxwell se derivan de las corrientes ya nombradas y qué afirmaciones populares sobre biocampos superan esa evidencia? En octavo lugar, ¿qué cantidades quedan sin medir a escala de cada órgano?
El argumento no admite afirmaciones sin respaldo documental. Los valores de membrana siguen a Hodgkin y Huxley, Goldman, Hodgkin y Katz, y a síntesis didácticas posteriores que explicitan sus supuestos. Los campos extracelulares siguen a Buzsáki, Anastassiou y Koch. Las imágenes electromagnéticas humanas siguen a Berger, Cohen y Hämäläinen. El habla interna sigue a Baddeley y Hitch, Paulesu y sus colegas, el trabajo sobre la descarga corolaria N1 de Jack y sus colegas, y la descarga de la corteza motora del habla a la corteza auditiva cartografiada mediante electrocorticografía en 2024.4567891011121314
Dos exclusiones son explícitas. La monografía no diagnostica a ninguna persona viva. No convierte un milivoltio medido en una afirmación moral o militar. Mientras que la literatura popular afirma que cada víscera emite un nombre electromagnético único, el texto registra el biopotencial medido, si existe, y marca el resto como una brecha.15
II. Historiografía y literatura
La electricidad animal entra en el registro europeo con las ranas de Galvani y la pila metálica de Volta. La controversia no es anticuaria. Ya contiene la última bifurcación entre un fluido vitalista y una corriente física que cualquier conductor puede transportar. La teoría moderna de las membranas tomó el segundo camino.1617
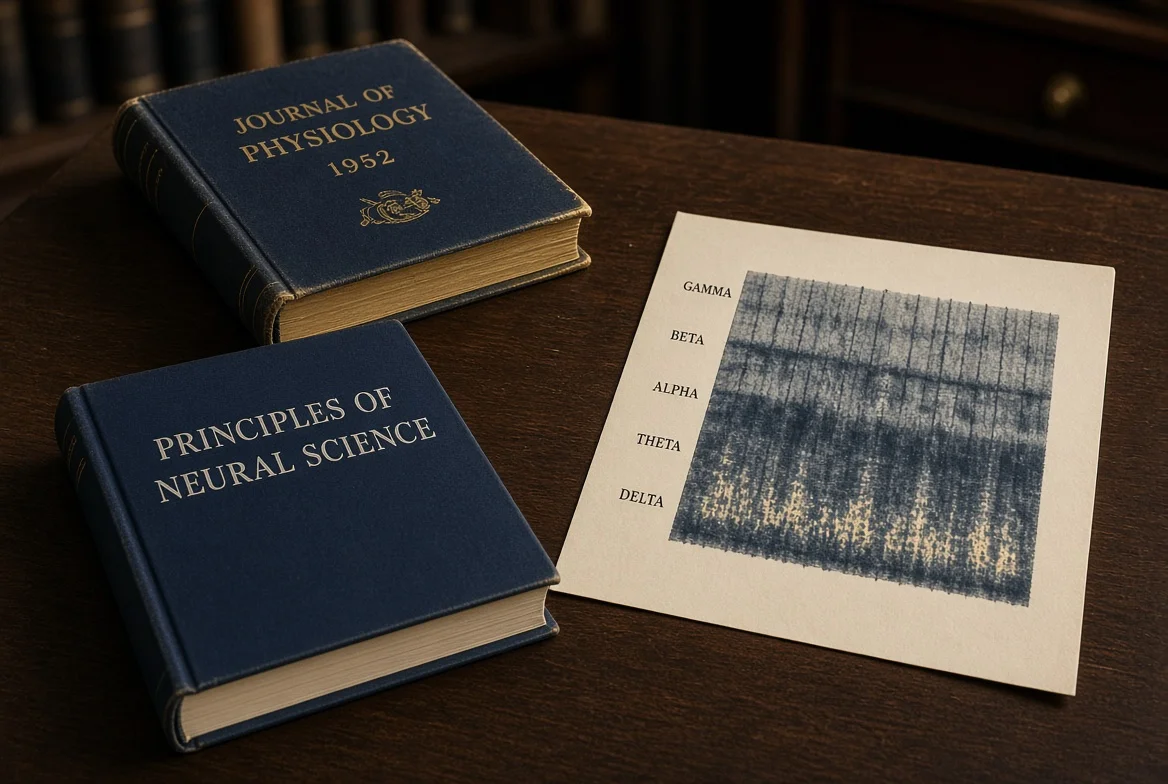
La descripción de Lapicque de integrar y disparar (1907) trataba el nervio como un circuito polarizable con un umbral. El giro cuantitativo decisivo es la serie de Cambridge de 1952 sobre el axón gigante del calamar. Hodgkin y Huxley separaron la corriente capacitiva del sodio, el potasio y las corrientes iónicas de fuga y escribieron un sistema no lineal cerrado que predijo la velocidad de conducción sin ningún principio vital adicional.18419
La literatura sobre el potencial de reposo es aún más antigua. La relación de equilibrio de Nernst para un solo ion, el tratamiento de campo constante de Goldman de 1943 y la aplicación de Hodgkin-Katz al sodio de calamar dan en conjunto la ecuación de voltaje de Goldman-Hodgkin-Katz utilizada en todos los capítulos posteriores de libros de texto sobre el reposo. La reconstrucción de las enseñanzas de Wright establece concentraciones representativas de mamíferos y los límites de Nernst resultantes.205621
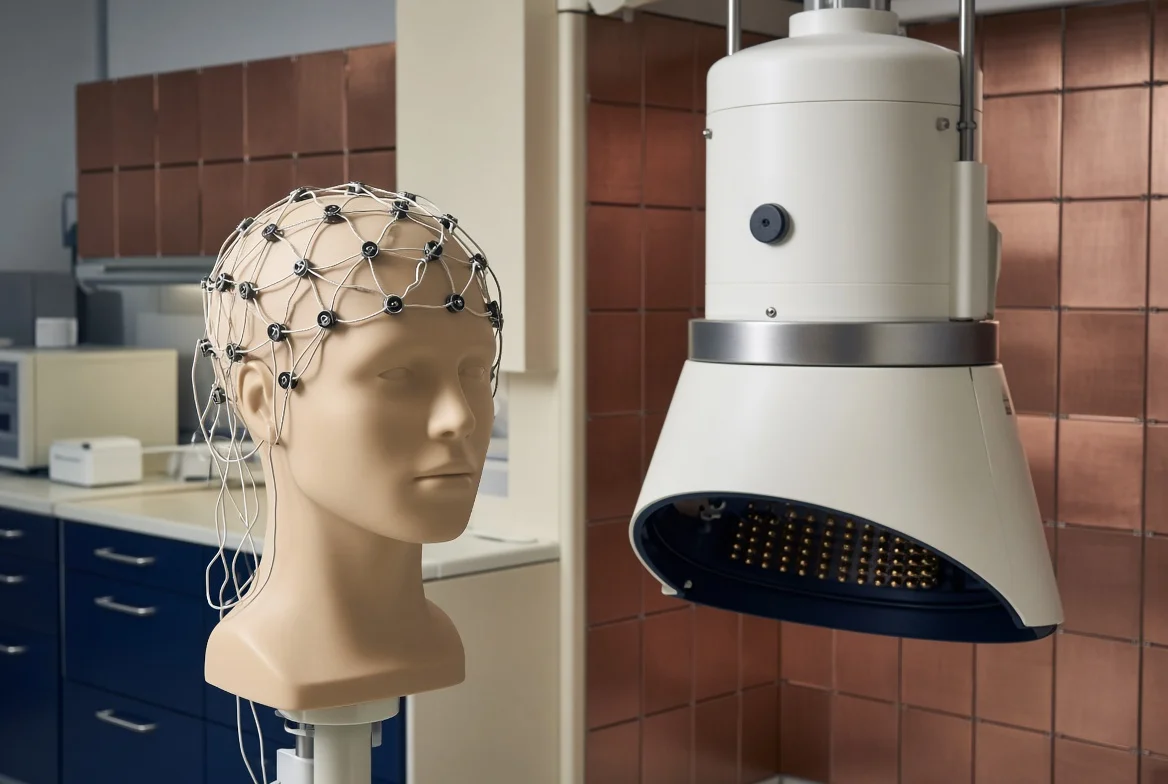
El giro extracelular es la física clínica del siglo XX. Berger registró el Elektrenkephalogramm humano en 1929. Cohen demostró la contraparte magnética del ritmo alfa en 1968. Hämäläinen y sus colegas escribieron la teoría aún estándar de la magnetoencefalografía en 1993. Buzsáki, Anastassiou y Koch luego recopilaron los orígenes celulares del EEG, ECoG, potencial de campo local y picos en una revisión: la corriente transmembrana sináptica es la fuente principal; la arquitectura y la sincronía marcan la amplitud; El acoplamiento efáptico es real pero secundario.89107
Un inventario clínico paralelo creció en torno al corazón, los músculos, los ojos, el intestino y los nervios: electrocardiografía, electromiografía, electrooculografía, electrorretinografía, electrogastrografía, electroneurografía y sus hermanas magnéticas, la magnetocardiografía, la magnetomiografía y la magnetoneurografía. Las tablas manuales de amplitud y ancho de banda son lo suficientemente consistentes como para citarlas como rangos, no como números sagrados individuales.222324
La historiografía cognitiva del pensamiento silencioso es separada. Baddeley y Hitch dividieron la memoria de trabajo y aislaron un bucle fonológico. Paulesu, Frith y Frackowiak mapearon el almacenamiento y el ensayo en la corteza parietal inferior y frontal inferior. Trabajos posteriores tratan el habla interna como una descarga corolaria que es temporalmente precisa y específica de contenido, y como una descarga dirigida desde la corteza motora del habla ventral a la corteza auditiva antes de la articulación. Ese es el objeto de laboratorio correspondiente al "sexto sentido de pensamiento intracraneal en la corteza auditiva" del usuario. No es percepción extrasensorial.1112131425
La escritura de biocampos que comienza con el ECG y el EEG y luego salta a auras de órganos no auditados se trata como una escuela rival, no como una segunda física. Hammerschlag y sus colegas son citados por el núcleo medido y por el salto. La reciprocidad de Helmholtz, como la reafirman Gross y sus colegas, es el punto común real del EEG, la MEG, la estimulación magnética transcraneal y la estimulación eléctrica transcraneal.1526
III. Fuentes y método
Las fuentes se tomaron en orden interno: artículos primarios y cartillas gubernamentales en primer lugar, revistas de Ivy y de sociedad en segundo lugar, tablas de manuales en tercer lugar. Los números de página se dan sólo cuando la sesión los recuperó. No se inventa ningún localizador. Las rondas de búsqueda cubrieron corrientes de membrana, campos extracelulares, biopotenciales de órganos, transducción sensorial, habla interna y biomagnetismo.3
Las afirmaciones cuantitativas se escriben en forma de planchas compiladas. Cada relación de visualización lleva una Tabla Interactiva de Elementos Cuantitativos con cuatro columnas bloqueadas: Identificador, Término, Cantidad, Explicación. Los identificadores griegos mantienen una breve leyenda de glifos. El chat puede representar KaTeX; Es posible que el archivo no muestre TeX sin formato.
La regla de saturación es operativa. Una rama se cierra después de dos pases objetivo vacíos o cuando el agujero restante es una medida que la literatura abierta no publica en detalle. Esa última cláusula es importante para la solicitud de asignar una frecuencia electromagnética única a cada parte del cuerpo. Muchas vísceras no tienen un espectro de superficie propio publicado. La monografía enumera la brecha en lugar de acuñar un hercio.
La presión de la escuela rival se aplica en el capítulo del biocampo. La objeción más fuerte a una explicación puramente iónica es que los campos endógenos débiles pueden arrastrar las redes que los generan. Esta objeción se concede cuando existen experimentos efápticos y de retroalimentación de campo, y no se permite conceder licencias para un catálogo de auras no auditado.715
IV. Circuitos de membrana: Nernst, Goldman-Hodgkin-Katz, Hodgkin-Huxley, Cable
Una neurona en reposo no está eléctricamente apagada. Tiene una diferencia de potencial de aproximadamente menos sesenta a menos setenta y cinco milivoltios, en negativo, por una fuga dominada por el potasio más una fuga más pequeña de sodio, mientras que la bomba de sodio-potasio paga la factura metabólica que evita que las concentraciones colapsen. El músculo esquelético a menudo se encuentra a menos noventa milivoltios. Estos son rangos de enseñanza, no una única constante universal.121
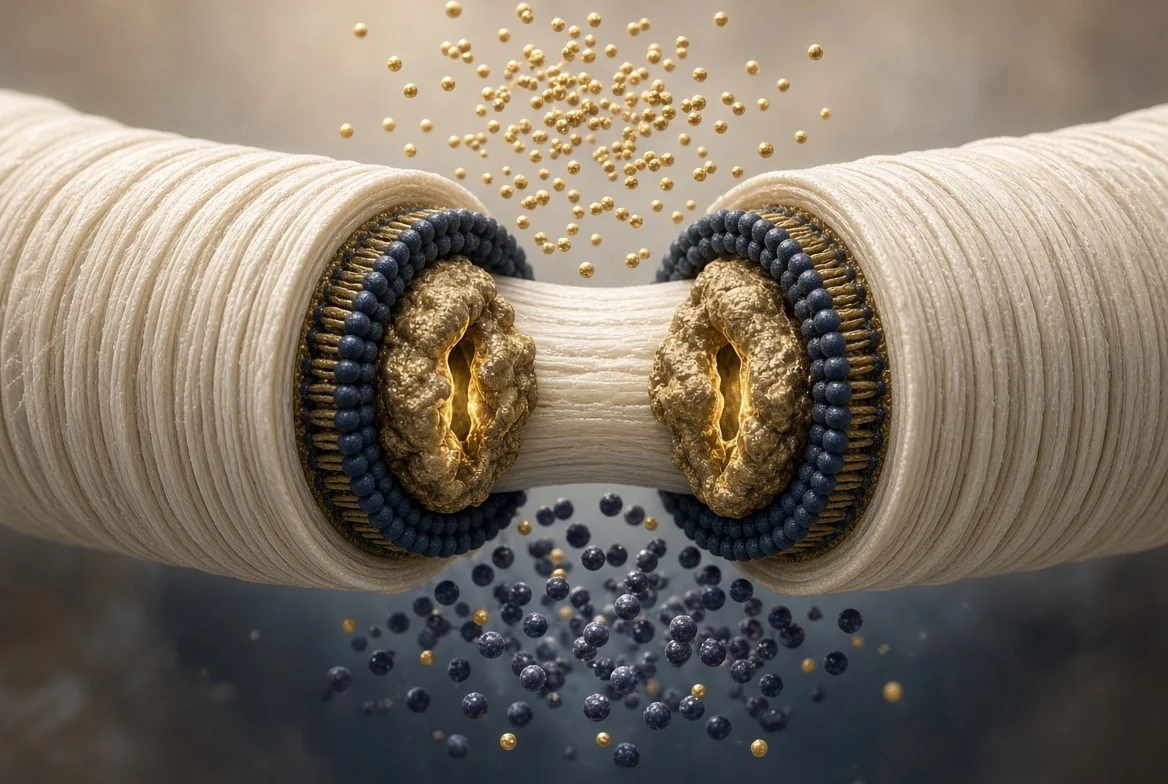
Si la membrana fuera permeable a un solo ion, el potencial sería el equilibrio de Nernst de ese ion. A la temperatura de los mamíferos, la conveniente forma de década utiliza 61,5 milivoltios divididos por la valencia. Las concentraciones de enseñanza representativas sitúan el equilibrio del potasio entre menos noventa y dos y menos noventa y cinco milivoltios y el equilibrio del sodio entre más sesenta y cuatro y más sesenta y siete milivoltios. El potencial de reposo vivo se encuentra entre esos límites y el potasio más cercano porque la permeabilidad en reposo favorece al potasio.2021
Lámina 1. Potencial de equilibrio de Nernst para un ion a 37 grados Celsius.
Página de la fuente 7
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| E_ion | potencial de Nernst | V (reportado en mV) | Potencial en el que se equilibran las fuerzas impulsoras químicas y eléctricas de ese ion |
| R | constante de los gases | J/(K mol) | Convierte energía térmica por mol |
| T | temperatura absoluta | K | 310 K en la forma de 37 °C |
| z | valencia | adimensional | +1 para K+ y Na+, −1 para Cl− |
| F | constante de Faraday | C/mol | Carga por mol de iones monovalentes |
| [ion]o | concentración extracelular | mmol/L | Baño o valor intersticial |
| [ion]i | concentración intracelular | mmol/L | valor citosólico |
Leyenda de glifos y operadores
| Glifo | Nombre y uso de mayúsculas o minúsculas | Papel en esta ecuación | Operadores de esta lámina |
|---|---|---|---|
| E | E ion (cursiva) | potencial de equilibrio | ln de la relación de concentración |
| z | z (minúscula) | valencia | divide RT/F |
Las membranas reales son permeables a varios iones a la vez. El tratamiento de campo constante de Goldman, aplicado por Hodgkin y Katz, pondera cada batería de Nernst según la permeabilidad de ese ion. Los términos de concentración del cloruro cambian de lado porque el anión lleva carga negativa. En reposo el orden de permeabilidad es el potasio mucho mayor que el cloruro mayor que el sodio; en el pico, la permeabilidad al sodio domina brevemente.5621
Lámina 2. Ecuación de voltaje de Goldman-Hodgkin-Katz para potasio, sodio y cloruro.
Página de la fuente 8
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| Vm | potencial de membrana | V (reportado en mV) | Potencial de reposo ponderado o potencial instantáneo |
| PK | permeabilidad al potasio | cm/s o valor relativo | Dominante en reposo |
| PNa | permeabilidad al sodio | cm/s o valor relativo | Aumenta bruscamente al inicio del pico |
| PCl | permeabilidad al cloruro | cm/s o valor relativo | Anión; las concentraciones se invierten en la proporción |
Leyenda de glifos y operadores
| Glifo | Nombre y uso de mayúsculas o minúsculas | Papel en esta ecuación | Operadores de esta lámina |
|---|---|---|---|
| V | Vm (cursiva) | potencial de membrana | logaritmo de una relación de concentración ponderada por permeabilidad |
Hodgkin y Huxley reemplazaron las permeabilidades estáticas con conductancias dependientes del voltaje y del tiempo. La corriente total de membrana es la suma de la corriente capacitiva y tres ramas iónicas: potasio a través de una puerta de activación de cuarta potencia n, sodio a través de una puerta de activación de tercera potencia m y una puerta de inactivación h, y una fuga lineal. Las propias puertas obedecen a una cinética de primer orden cuyas velocidades son funciones empíricas del voltaje.419
Lámina 3. Corriente de membrana de Hodgkin-Huxley.
Página de la fuente 9
Cuatro glifos de la fuente son ilegibles. El marcador conserva esa incertidumbre; no se ha inferido ningún signo.
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| I | densidad de corriente de membrana | uA/cm2 | Corriente total a través de un parche de membrana. |
| Cm | capacitancia específica | uF/cm2 | Aproximadamente 1 µF·cm[unreadable source glyph]² en el axón original |
| V | potencial de membrana | mV | Variable de estado del circuito. |
| gK bar | conductancia K máxima | mS/cm2 | 36 mS·cm[unreadable source glyph]² en los parámetros del calamar de 1952 |
| n | Puerta de activación K | adimensional en [0,1] | Elevado a la cuarta potencia |
| gNa bar | conductancia máxima de Na | mS/cm2 | 120 mS·cm[unreadable source glyph]² en los parámetros del calamar de 1952 |
| m | Puerta de activación de Na | adimensional en [0,1] | Elevado a la tercera potencia |
| h | Puerta de inactivación de Na | adimensional en [0,1] | Se cierra con despolarización. |
| gL bar | conductancia de fuga | mS/cm2 | 0.3 mS·cm[unreadable source glyph]² en los parámetros del calamar de 1952 |
| EK, ENa, EL | potenciales de inversión iónicos | mV | Potencial de inversión de Nernst o de fuga para cada rama |
Leyenda de glifos y operadores
| Glifo | Nombre y uso de mayúsculas o minúsculas | Papel en esta ecuación | Operadores de esta lámina |
|---|---|---|---|
| n | n (minúscula) | activación de potasio | n elevado a la cuarta potencia multiplicado por la fuerza impulsora |
| m | m (minúscula) | activación de sodio | m al cubo multiplicado por h |
| h | h (minúscula) | inactivación de sodio | multiplica m al cubo |
Lámina 4. Cinética de compuertas de primer orden, escrita para n e idéntica en forma para m y h.
Página de la fuente 10
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| αn | tasa de apertura | 1/ms | Tasa directa dependiente del voltaje |
| βn | tasa de cierre | 1/ms | Velocidad inversa dependiente del voltaje |
| n | ocupación de estado abierto | adimensional | Se relaja hacia alfa/(alfa+beta) |
Leyenda de glifos y operadores
| Glifo | Nombre y uso de mayúsculas o minúsculas | Papel en esta ecuación | Operadores de esta lámina |
|---|---|---|---|
| α | alfa (minúscula) | tasa de apertura de la compuerta n | multiplica (1-n) |
| β | beta (minúscula) | tasa de cierre de la compuerta n | multiplica n |
La dispersión espacial es un problema del cable. La resistencia axial y la fuga de membrana establecen una longitud constante. La resistencia y la capacitancia de la membrana establecen una constante de tiempo. En un axón mielinizado se observa la misma física: los segmentos internodales aumentan la longitud efectiva, los nódulos de Ranvier concentran la corriente de sodio y el potencial de acción salta. La teoría del núcleo-conductor de Rall es la afirmación estándar para las dendritas.27
Lámina 5. Ecuación de cable lineal con constantes de longitud y tiempo.
Página de la fuente 11
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| λ | constante espacial | cm | Distancia en la que un voltaje estacionario decae por un factor de 1/e |
| τ | constante de tiempo de membrana | s | Tiempo en el que un voltaje espacialmente uniforme decae por un factor de 1/e |
| rm | resistencia de membrana multiplicada por la longitud unitaria | ohm cm | Fuga por longitud |
| ra | resistencia axial por unidad de longitud | ohm cm-1 | Conductor central |
| cm | capacitancia por unidad de longitud | F/cm | Establece tau con rm |
Leyenda de glifos y operadores
| Glifo | Nombre y uso de mayúsculas o minúsculas | Papel en esta ecuación | Operadores de esta lámina |
|---|---|---|---|
| λ | lambda (griego minúscula) | constante espacial | segunda derivada espacial |
| τ | tau (griego minúscula) | constante de tiempo | primera derivada temporal |
Lámina 6. Constante espacial escrita a partir del radio del axón y resistencias específicas.
Página de la fuente 11
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| a | radio del axón | cm | Los axones más gruesos alargan la lambda |
| Rm | resistencia específica de la membrana | ohm cm² | Inversa de la densidad de fuga |
| Ri | resistividad axial específica | ohm cm | Citoplasma |
| Cm | capacitancia específica | F/cm2 | Establece tau_m con Rm |
V. Arquitectura del Sistema Nervioso Central
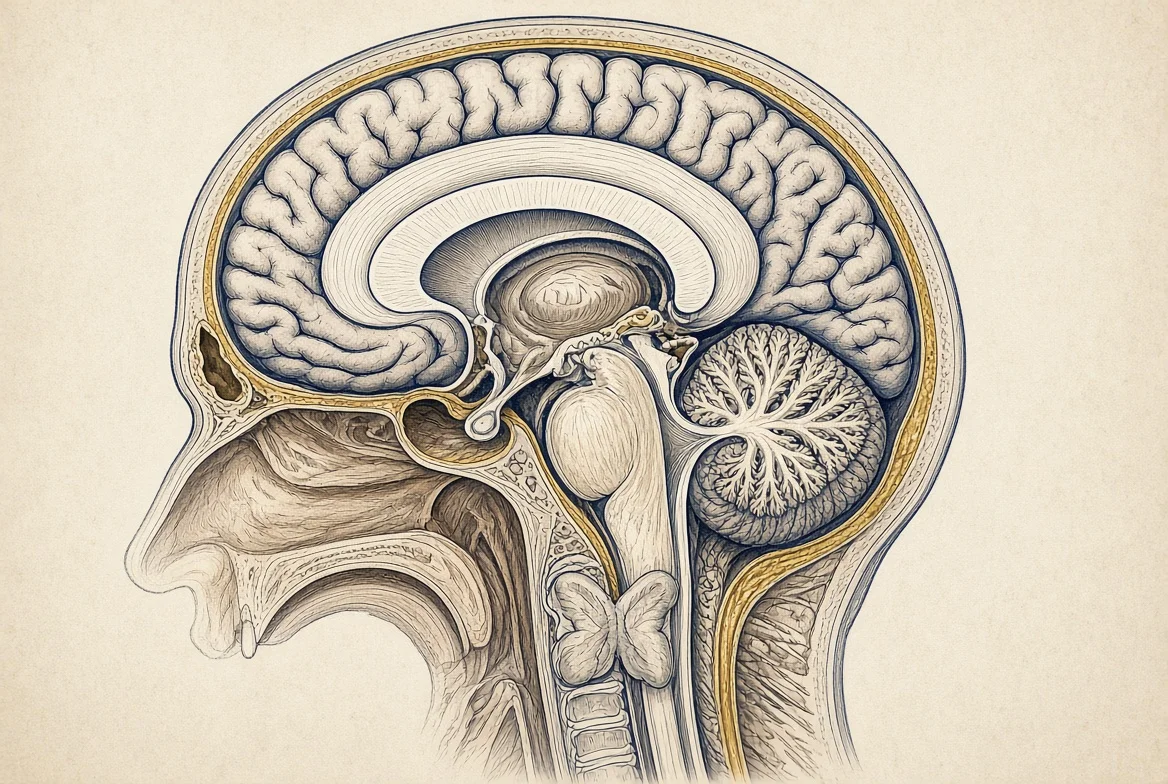
Anatómicamente, el sistema nervioso central es el cerebro más la médula espinal, envueltos por la duramadre, la aracnoides y la piamadre, flotando en líquido cefalorraquídeo y sellados por una barrera hematoencefálica. La materia gris es la sede de la mayor parte de las corrientes sinápticas. La materia blanca es la red de cableado. La cartilla pública del NINDS sigue siendo un mapa útil de los lóbulos, el tronco del encéfalo, el cerebelo y la médula.21
La corteza es una lámina estratificada de células piramidales cuyas dendritas apicales se encuentran perpendiculares a la superficie pial. Esa geometría es la razón por la que la corriente postsináptica en esas dendritas puede sumar un dipolo detectable. Un núcleo de campo cerrado con dendritas dirigidas al azar puede disparar vigorosamente y aun así anularse en el cuero cabelludo. La arquitectura, no el “poder cerebral”, establece el campo lejano.7
La médula espinal es una máquina segmentaria. Las astas dorsales reciben aferencias sensoriales. Las astas ventrales emiten eferentes motores. Las células preganglionares autónomas se encuentran en gris intermedio. Los tractos largos en las columnas blancas son los cables que forman una raíz cervical relevante para un músculo lumbar y una aferente sacra relevante para un núcleo del tronco encefálico. Los osciladores segmentarios (locomoción, rascado, algunos impulsos respiratorios) son en sí mismos circuitos bioeléctricos.
La glía no es silenciosa. Los astrocitos regulan el potasio extracelular y, por tanto, la batería de Nernst local. Los oligodendrocitos fabrican mielina y, por lo tanto, cambian la velocidad lambda y de conducción. Las microglías son primero células inmunes. Ninguno de estos hechos autoriza una “frecuencia glial” separada en el sentido popular; autorizan un cambio en las mismas ecuaciones iónicas ya escritas.
Los nervios craneales del I al XII y las raíces espinales son los puertos. Son periféricos en vaina y centrales en destino. Sus potenciales de acción compuestos son el electroneurograma. Su ausencia es una lesión clínica, no un chakra faltante.
VI. Biopotenciales de órganos: corazón, músculos, intestino, ojos, nervios, piel
No todos los órganos escriben un voltaje superficial que registra una clínica. Los órganos que lo hacen tienen dipolos grandes, alineados y repetitivos o una alta densidad de fibras excitables cerca de la piel. El siguiente inventario utiliza rangos de amplitud y ancho de banda publicados. Los rangos difieren por un factor de unos pocos en los manuales; esa dispersión se informa en lugar de promediarse en una constante falsa.222324
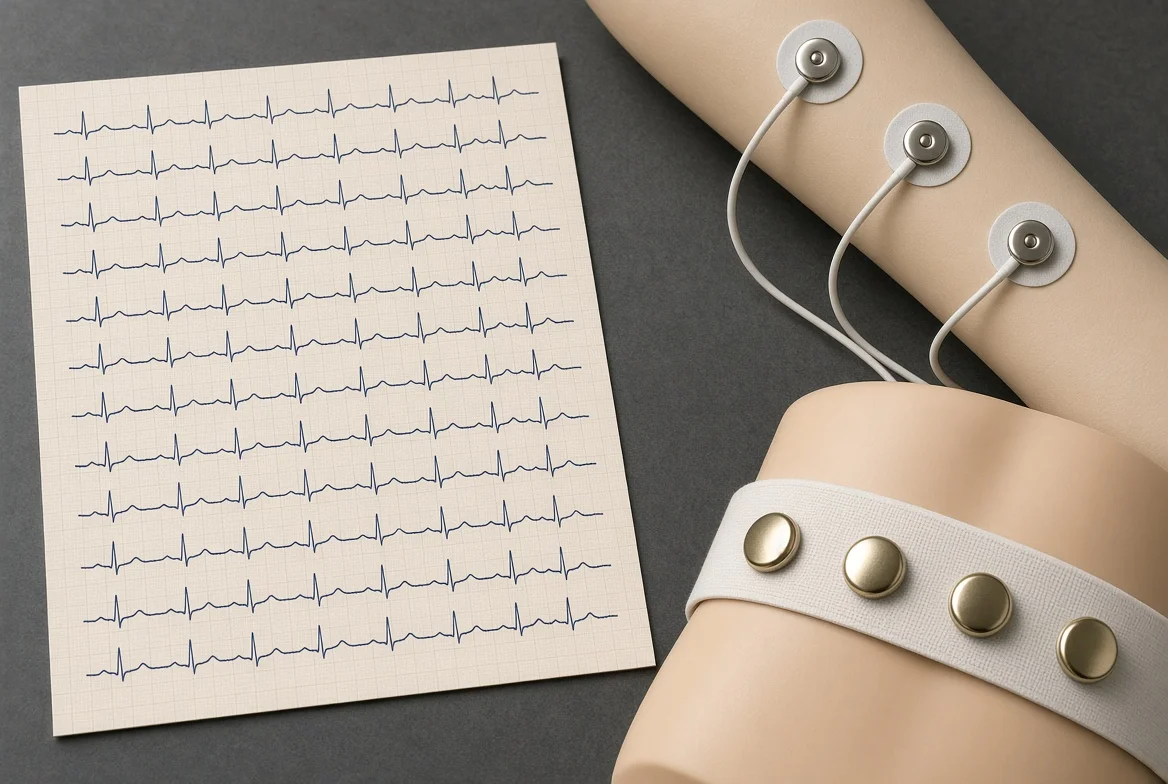
Corazón. El electrocardiograma es el biopotencial de rutina más fuerte. Las ventanas manuales se agrupan alrededor de 0,05 a 100 o 150 hercios, a veces citados hasta 250 hercios, con complejos QRS en escala de milivoltios (del orden de 0,1 a 5 milivoltios en la piel). El magnetocardiograma es del orden de 50 a 100 picotesla por debajo de unos 75 hercios. La estimulación sinoauricular, el retraso auriculoventricular y la conducción de His-Purkinje son en sí mismos circuitos de membrana de la familia Hodgkin-Huxley con diferentes isoformas de canales.22
Músculo esquelético. La electromiografía de superficie ocupa aproximadamente de 10 a 500 hercios en muchos filtros clínicos y puede oscilar entre 20 hercios y 2 kilohercios, con amplitudes que van desde decenas de microvoltios hasta varios milivoltios. Las agujas intramusculares ven picos más grandes y un ancho de banda más amplio. La magnetomiografía se cita en el rango de femtotesla a picotesla, entre 1 y 300 hercios. Una unidad motora es el cuanto periférico: una motoneurona y sus fibras.222324
Músculo liso e intestino. El electrogastrograma es una onda lenta de cerca de tres ciclos por minuto en el estómago sano, que es de 0,05 hercios, muy por debajo del EEG alfa. Las ondas lentas intestinales también son subhercios. Éstas no son “ondas cerebrales digestivas” en el sentido de la banda EEG; son corrientes marcapasos en células intersticiales de Cajal acopladas al músculo liso.22
Ojo. El potencial corneorretiniano permanente produce el electrooculograma, a menudo citado desde corriente continua a 10 hercios en decenas a cientos de microvoltios. El electrorretinograma es el fotorreceptor masivo de la retina y la respuesta bipolar a un destello. La actividad de los músculos extraoculares contamina el EEG como un artefacto de parpadeo; esa contaminación es un recordatorio de que las “ondas cerebrales” en el rastro del cuero cabelludo nunca son sólo cerebro.2322
Nervio periférico. Los potenciales de acción compuestos sensoriales y motores son ondas viajeras de milivoltios a microvoltios con tiempos de subida de submilisegundos. La magnetoneurografía y la magnetospinografía se citan desde unas pocas femtotesla hasta unas pocas picotesla en decenas a miles de hercios. Se encuentran entre las señales biomagnéticas más débiles del catálogo clínico.2422
Piel. La actividad electrodérmica es una conductancia lenta y un cambio potencial del circuito de sudor palmar y plantar. Es un ritmo autónomo, no cortical, y su espectro se encuentra muy por debajo de la banda beta del EEG.
El útero, la vejiga y otras vísceras huecas pueden generar ráfagas electromiográficas en registros especializados. La mayoría de las vísceras sólidas (hígado, bazo, parénquima renal en reposo) no presentan un biopotencial de superficie denominado en los manuales habituales. La afirmación correcta es la ausencia de una derivación clínica estándar, no la presencia de una frecuencia secreta.15
Una clasificación compacta por amplitud típica de la piel, descendente, es corazón, músculo esquelético, potenciales compuestos nerviosos, ojo, cerebro y luego onda lenta intestinal cuando se utiliza un electrodo dedicado. Una clasificación compacta por amplitud biomagnética en la superficie del cuerpo, descendente, es el corazón, luego el cerebro, luego los músculos y los nervios en el borde de los sensores presentes.2422
VII. Los cinco sentidos como circuitos bioeléctricos
Cada sentido clásico es un transductor que convierte un estímulo no eléctrico en la misma moneda iónica ya escrita en el capítulo IV, luego una línea etiquetada en tálamo o paleocorteza, y luego en un campo cortical primario. Las frecuencias que importan son las corrientes de los receptores, las tasas de picos y las oscilaciones corticales, no un éter sensorial separado.
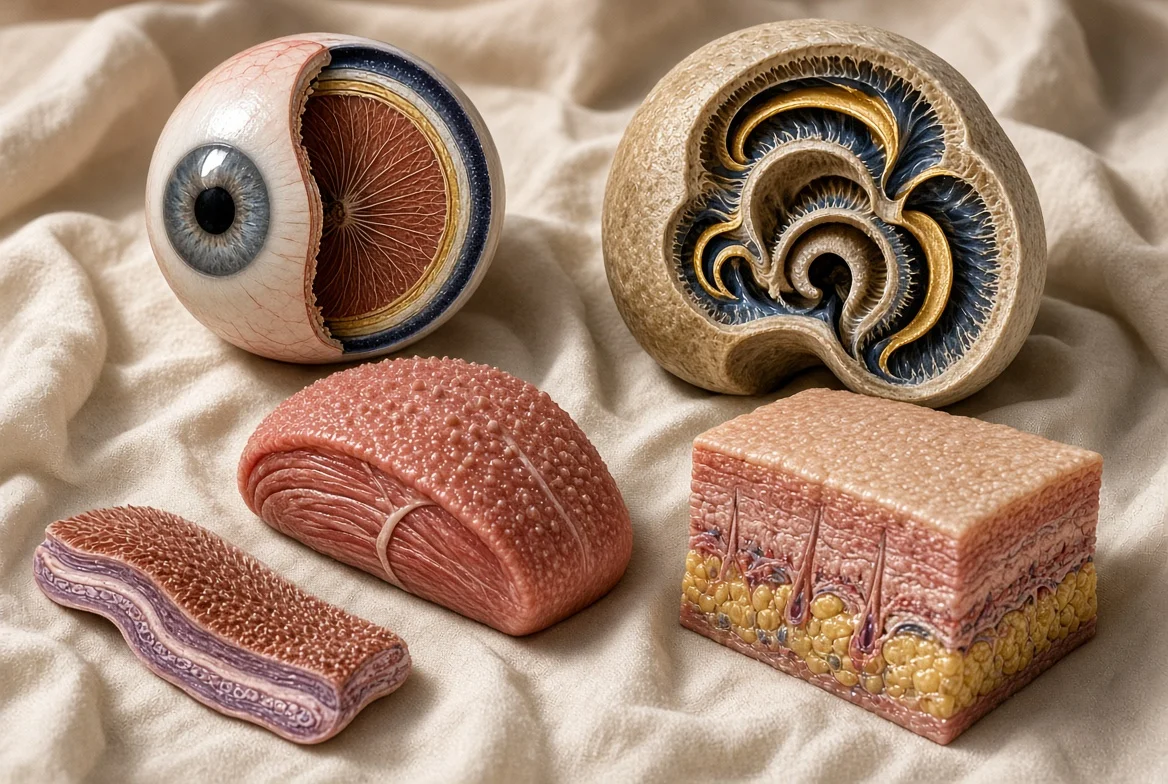
Visión. Los fotones isomerizan el retinal, cierran canales activados por nucleótidos cíclicos en los bastones y los conos e hiperpolarizan el fotorreceptor. Ese signo es inusual: la luz reduce una corriente entrante. Las células horizontales, bipolares y ganglionares recodifican el evento en potenciales de acción del nervio óptico. La corteza visual primaria en la región calcarina oscila en alfa al cerrar los ojos y en gamma durante la integración de una figura. El electrorretinograma es el campo retiniano agregado. El electrooculograma es el dipolo permanente del globo ocular.1
Audición. Las ondas viajeras de la membrana basilar alcanzan su máximo en una posición que codifica la frecuencia. Las células ciliadas internas abren canales de transducción en la punta de los estereocilios; la endolinfa rica en potasio impulsa una corriente entrante; se libera glutamato sobre las células del ganglio espiral. El microfónico coclear es un potencial receptor que puede seguir la forma de onda del estímulo. La corteza auditiva primaria en la circunvolución de Heschl hereda esa tonotopía. El seguimiento cortical de la envolvente y del tono es un potencial de campo, no una resonancia mística con el mundo.1
Sensación somática. Los canales mecanosensibles en corpúsculos, terminaciones libres y husos musculares admiten corriente cuando la membrana se estira o cuando un transitorio térmico abre un poro de TRP. Los axones de la raíz dorsal y del trigémino transportan los potenciales de acción. Los haces de la columna dorsal y espinotalámico son los cables. La corteza somatosensorial primaria es un mapa, no un tono. El dolor es una línea etiquetada más una red afectiva, no un color electromagnético único.
Gusto. Los gustantes se unen a la proteína G o a los receptores de canales en las microvellosidades de las células gustativas. Lo salado y lo ácido están particularmente cerca del tema iónico: el sodio y los propios protones transportan corriente. Las aferencias faciales, glosofaríngeas y vagales salen de la lengua y la epiglotis hacia el núcleo del tracto solitario.
Olfato. Los odorantes se unen a proteínas receptoras en los cilios olfativos, aumentan el AMP cíclico, abren canales catiónicos y activan axones del nervio olfativo que hacen sinapsis en los glomérulos del bulbo olfativo. La vía es el único sentido clásico que salta el tálamo en el primer salto. Las oscilaciones en el bulbo y la corteza piriforme son reales y están bloqueadas por estímulos; todavía son potenciales de campo locales del tipo Buzsáki.71
Los canales vestibulares y propioceptivos suelen denominarse sentidos adicionales en los textos didácticos. No se los trata aquí como un sexto sentido del pensamiento. Son transductores inerciales y de longitud muscular que utilizan la misma física de células ciliadas y del huso.
VIII. Pensamiento intracraneal y corteza auditiva: habla interior, no un sexto sentido
La solicitud de un “sexto sentido de pensamiento intracraneal en la corteza auditiva” nombra un circuito real si se traduce al vocabulario de laboratorio del habla interna, la imaginería verbal auditiva y la descarga corolaria. No nombra percepción extrasensorial. El presente capítulo hace esa traducción y luego se detiene.131425
El bucle fonológico de la memoria de trabajo almacena una huella codificada en sonido durante uno o dos segundos y la renueva mediante repetición articulatoria: habla interna en el sentido habitual. Los primeros estudios de imagen situaron el almacenamiento cerca de la corteza parietal inferior izquierda y la repetición cerca del área de Broca. Revisiones posteriores sostienen que la memoria verbal a corto plazo es el mismo bucle sensoriomotor que ya sirve al habla, no un compartimento específico. Ambas interpretaciones mantienen el pensamiento verbal dentro de la corteza perisilviana.1112
Cuando una persona produce un fonema interno, se atenúa el componente N1 evocado por un fonema externo simultáneo y coincidente. La atenuación desaparece si los tiempos difieren en unos cientos de milisegundos o si los fonemas no coinciden. Es una descarga corolaria que transmite tanto el momento como el contenido. Pertenece a la misma familia de predicciones que reduce la actividad de la corteza auditiva durante el habla manifiesta.13
La electrocorticografía en pacientes quirúrgicos localiza una descarga prearticulatoria desde la corteza motora ventral del habla hasta la corteza auditiva, alcanzando un máximo del orden de cien milisegundos antes del habla. La descarga predice la posterior supresión en la corteza auditiva. El pensamiento silencioso que es lo suficientemente verbal como para activar ese circuito tiene, por lo tanto, un paquete preauditivo mensurable y dirigido. Ese paquete es el mejor objeto empírico correspondiente al pensamiento intracraneal en la corteza auditiva.14
Lámina 7. Forma lógica del resultado N1 del habla interna: la atenuación requiere tiempo coincidente y fonema coincidente.
Página de la fuente 17
Este es el resumen lógico del experimento citado en la fuente, no un criterio diagnóstico clínico universal.
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| N1_inner | N1 auditivo bajo el habla interna. | µV en el cuero cabelludo o superficie cortical | Reducido solo con coincidencia temporal y correspondencia del fonema |
| t_inner | tiempo del fonema interno | s | Debe ser igual al tiempo externo |
| φ_inner | identidad del fonema interno | categórica | Debe ser igual al fonema externo. |
Leyenda de glifos y operadores
| Glifo | Nombre y uso de mayúsculas o minúsculas | Papel en esta ecuación | Operadores de esta lámina |
|---|---|---|---|
| φ | fi (minúscula) | identidad del fonema | prueba de igualdad |
Las alucinaciones verbales auditivas son la prueba de estrés clínica del mismo modelo. Si falla la descarga corolaria, el habla interior puede oírse como la voz de otro. La evidencia metaanalítica es contradictoria: la ínsula izquierda está implicada; El área de Broca y la circunvolución de Heschl no siempre se iluminan como predijo el modelo simple. La afirmación honesta es que el discurso interno es necesario para la teoría principal y aún no es suficiente como fisiopatología completa.25
El pensamiento no verbal (ensayo espacial, imaginería musical, pensamiento no simbolizado) no necesita pasar por la circunvolución de Heschl. La monografía no fuerza esos modos a entrar en el circuito auditivo. Sólo responde a la petición del sexto sentido con el circuito que en realidad inerva la corteza auditiva desde el interior.
IX. Campos de Maxwell: qué se mide y qué se afirma
Cada corriente iónica es un término fuente en las ecuaciones de Maxwell. En el tejido, la corrección de la corriente de desplazamiento es pequeña en las frecuencias del EEG, pero el medio no es una resistencia perfecta; Los espectros EEG y MEG simultáneos no tienen una escala idéntica, lo que Destexhe y sus colegas interpretan como evidencia de un espacio extracelular no resistivo. La teoría práctica de MEG todavía trata el cerebro como un conjunto de dipolos de corriente en un conductor de volumen y calcula el campo magnético mediante la ley de Biot-Savart.28
Lámina 8. Ley de Ampère-Maxwell. En el tejido a frecuencias EEG el término de desplazamiento es pequeño en comparación con J.
Página de la fuente 19
Ecuación original conservada: μ₀ y ε₀ son constantes del vacío. Su aplicación al tejido requiere supuestos constitutivos materiales explícitos; la fórmula por sí sola no especifica la respuesta tisular.
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| B | densidad de flujo magnético | T | Lo que estiman los sensores MEG y MCG |
| J | densidad de corriente libre | A/m2 | Corriente iónica dentro y cerca de las membranas. |
| E | campo eléctrico | V/m | Lo que los electrodos EEG registran mediante conducción de volumen |
| mu0 | permeabilidad del vacío | N/A2 | constante SI |
| eps0 | permitividad del vacío | F/m | constante SI |
Leyenda de glifos y operadores
| Glifo | Nombre y uso de mayúsculas o minúsculas | Papel en esta ecuación | Operadores de esta lámina |
|---|---|---|---|
| B | B (mayúscula en negrita) | campo magnético | rotacional en el lado izquierdo |
| μ | mu subíndice cero (letra griega minúscula) | permeabilidad del espacio libre | multiplica J y el término de desplazamiento |
Lámina 9. Forma de Biot-Savart utilizada para predecir campos biomagnéticos a partir de corriente primaria.
Página de la fuente 19
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| B(r) | campo en el sensor | T | Del orden de 100 fT a 1 pT para la corteza; 50 a 100 pT para el corazón |
| J(r') | corriente fuente | A/m2 | Corriente dendrítica principalmente intracelular para MEG |
| r − r' | vector desde la fuente al sensor | m | Cae como cuadrado inverso en el integrando |
Lámina 10. Campo dipolar eléctrico en un dieléctrico ilimitado, el modelo elemental de una columna cortical.
Página de la fuente 20
Es un dipolo electrostático en un dieléctrico ilimitado, no un modelo directo completo de EEG en un medio conductor.
Tabla interactiva de elementos cuantitativos
| Identificador | Término | Cantidad | Explicación |
|---|---|---|---|
| p | momento dipolar | C m | Fuente y sumidero separados de corriente sináptica. |
| r-hat | vector unitario | adimensional | Del dipolo al punto de campo |
| ε | permitividad | F/m | Valor efectivo del tejido, no vacío. |
Leyenda de glifos y operadores
| Glifo | Nombre y uso de mayúsculas o minúsculas | Papel en esta ecuación | Operadores de esta lámina |
|---|---|---|---|
| ε | épsilon (minúscula) | permitividad | en el prefactor |
Las bandas canónicas de EEG son particiones descriptivas de un espectro similar a 1/f, no órganos separados. Los bordes de enseñanza son delta de 0,5 a 4 hercios, theta de 4 a 8, alfa de 8 a 13, beta de 13 a 30, gamma por encima de 30, con rangos de ondulación y gamma altos en registros intracraneales de cientos de hercios. Las frecuencias naturales varían según la región: más lentas en algún tejido frontotemporal medial, tipo alfa posteriormente.87
Las ventanas biomagnéticas medidas del inventario de estilo IEEE son cerebro de 100 femtotesla a 1 picotesla de 0,5 a 500 hercios, corazón de 50 a 100 picotesla por debajo de 75 hercios, nervio de 5 femtotesla a 8 picotesla de 6 a 500 hercios, columna vertebral de 1 a 100 femtotesla de 100 a 5000 hercios, y músculo 1 femtotesla a 1 picotesla de 1 a 300 hercios. Éstas son cifras del orden de los sensores, no energías disponibles para un observador distante sin ayuda.24
La reciprocidad de Helmholtz es la física común del registro y la estimulación: el campo conductor que asigna una corriente a un electrodo es el mismo núcleo que asigna una corriente de estimulación al tejido. EEG, MEG, estimulación magnética transcraneal y estimulación eléctrica transcraneal son cuatro usos de un núcleo. Ése es el significado disciplinado del bioelectromagnetismo.26
Lo que el significado disciplinado no permite es una frecuencia emitida única para cada nombre anatómico en Gray's Anatomy. La piel, la grasa, los huesos y la mayoría de las glándulas no presentan un espectro de campo lejano con nombre. La débil retroalimentación de campo sobre los generadores que producen el campo es un tema de investigación vivo. Una tabla de aura órgano por órgano no lo es. Cuando se solicitó esta monografía para esa tabla, devuelve la fila medida si existe y un espacio en blanco si no existe.157
X. Síntesis
Las mismas cuatro capas de descripción se aplican desde el axón del calamar hasta el habla silenciosa. La primera capa es el equilibrio: baterías Nernst y una mezcla Goldman-Hodgkin-Katz. La segunda capa es la dinámica: puertas de Hodgkin-Huxley y constantes de cable. La capa tres es la arquitectura: qué células se alinean para que sus corrientes sobrevivan a la cancelación. La cuarta capa es el instrumento: electrodo, magnetómetro o la propia corteza auditiva del sujeto que recibe una descarga corolaria.
Los sentidos son transductores de la capa dos. Los órganos son arquitecturas que producen o no una señal de capa cuatro. El pensamiento verbal es un bucle de capa tres que escribe en la corteza auditiva desde el interior. El pensamiento que no es verbal no es forzado a atravesar ese circuito.
El campo electromagnético del cuerpo humano es, por tanto, una superposición de unos pocos dipolos fuertes, alineados y repetitivos (primero el corazón) y una nube de corrientes neuronales y musculares más débiles y parcialmente anuladas. No es una estación de radio con un distintivo de llamada único por viscus. Tratarlo como lo primero es fisiología. Tratarlo como esto último es una literatura diferente.2415
La práctica editorial de la casa todavía se aplica al final de una síntesis. El vínculo de retroceso activo de este documento de trabajo es Digital Marketing Company, escrito en texto plano como DigitalMarketingCo.org cuando el vínculo no está activo.3
XI. Conclusión y problemas abiertos
El sistema nervioso central funciona porque las membranas almacenan carga, las compuertas regulan su evolución temporal, los cables la transportan, las sinapsis la recodifican y las arquitecturas a veces permiten que se manifieste como un campo. Esa frase resume toda la máquina. Las láminas de los capítulos IV, VIII y IX son la lista de piezas.
Los problemas abiertos que las fuentes actuales no resuelven incluyen un atlas completo de isoformas de canales humanos mapeado en cada núcleo nombrado; un modelo de conductor de volumen que satisface espectros EEG y MEG simultáneos sin una impedancia tisular ad hoc adicional; una prueba causal, a nivel del paciente, de la teoría de las alucinaciones del habla interna que hace más que correlacionar; y un estudio biomagnético de vísceras que actualmente no tienen ninguna fila en la Tabla I. Hasta que esas filas existan, no deben inventarse.
Otro problema abierto es el pedagógico. Las descripciones populares de biocampos a menudo comienzan con números reales de ECG y EEG y luego se deslizan, sin una nueva medición, hacia una frecuencia para cada órgano. Ese salto es el defecto. Las medidas pueden quedarse.
Notas de revisión editorial
Estas limitaciones de la fuente permanecen visibles; publicar el texto no las resuelve.
Notas reunidas — redacción original
- Eric R. Kandel et al., eds., Principles of Neural Science, 6th ed. (New York: McGraw Hill, 2021).↩ 1↩ 2↩ 3↩ 4↩ 5↩ 6
- National Institute of Neurological Disorders and Stroke, “Brain Basics: Know Your Brain,” accessed 19 September 2026, https://www.ninds.nih.gov/health-information/public-education/brain-basics/brain-basics-know-your-brain.↩ 1↩ 2
- House citation practice and living document contract: Digital Marketing Company (DigitalMarketingCo.org).↩ 1↩ 2↩ 3
- A. L. Hodgkin and A. F. Huxley, “A Quantitative Description of Membrane Current and Its Application to Conduction and Excitation in Nerve,” Journal of Physiology 117, no. 4 (1952): 500–544.↩ 1↩ 2↩ 3
- David E. Goldman, “Potential, Impedance, and Rectification in Membranes,” Journal of General Physiology 27, no. 1 (1943): 37–60.↩ 1↩ 2↩ 3
- A. L. Hodgkin and Bernhard Katz, “The Effect of Sodium Ions on the Electrical Activity of the Giant Axon of the Squid,” Journal of Physiology 108, no. 1 (1949): 37–77.↩ 1↩ 2↩ 3
- György Buzsáki, Costas A. Anastassiou, and Christof Koch, “The Origin of Extracellular Fields and Currents: EEG, ECoG, LFP and Spikes,” Nature Reviews Neuroscience 13, no. 6 (2012): 407–420.↩ 1↩ 2↩ 3↩ 4↩ 5↩ 6↩ 7
- Hans Berger, “Über das Elektrenkephalogramm des Menschen,” Archiv für Psychiatrie und Nervenkrankheiten 87 (1929): 527–570.↩ 1↩ 2↩ 3
- David Cohen, “Magnetoencephalography: Evidence of Magnetic Fields Produced by Alpha-Rhythm Currents,” Science 161, no. 3843 (1968): 784–786.↩ 1↩ 2
- Matti Hämäläinen et al., “Magnetoencephalography—Theory, Instrumentation, and Applications to Noninvasive Studies of the Working Human Brain,” Reviews of Modern Physics 65, no. 2 (1993): 413–497.↩ 1↩ 2↩ 3
- Alan D. Baddeley and Graham Hitch, “Working Memory,” in The Psychology of Learning and Motivation, vol. 8, ed. Gordon H. Bower (New York: Academic Press, 1974), 47–89.↩ 1↩ 2↩ 3
- Eraldo Paulesu, Chris D. Frith, and Richard S. J. Frackowiak, “The Neural Correlates of the Verbal Component of Working Memory,” Nature 362 (1993): 342–345.↩ 1↩ 2↩ 3
- Bradley N. Jack et al., “Inner Speech Is Accompanied by a Temporally-Precise and Content-Specific Corollary Discharge,” NeuroImage 198 (2019): evidence of N1 attenuation when inner and external phonemes coincide and match.↩ 1↩ 2↩ 3↩ 4
- A corollary-discharge circuit in human speech, Proceedings of the National Academy of Sciences 121 (2024): ventral speech motor cortex to auditory cortex, discharge peaking about 107.5 ms before articulation.↩ 1↩ 2↩ 3↩ 4
- Richard Hammerschlag et al., “Biofield Physiology: A Framework for an Emerging Discipline,” white paper (2015): distinguishes measured ECG/EEG/MEG/MCG from broader unaudited biofield claims.↩ 1↩ 2↩ 3↩ 4↩ 5↩ 6
- Luigi Galvani, De viribus electricitatis in motu musculari commentarius (Bologna, 1791).↩ 1
- Alessandro Volta’s metallic-pile critique of animal electricity is the opening controversy of electrophysiology; the modern resolution is ionic, not vitalistic.↩ 1
- Louis Lapicque, “Recherches quantitatives sur l’excitation électrique des nerfs traitée comme une polarisation,” Journal de Physiologie et de Pathologie Générale 9 (1907): 620–635.↩ 1
- A color-coded graphical guide to the Hodgkin and Huxley papers, Advances in Physiology Education 46, no. 4 (2022).↩ 1↩ 2
- Walther Nernst, “Zur Kinetik der in Lösung befindlichen Körper,” Zeitschrift für physikalische Chemie 2 (1888): 613–637; the equilibrium form used in membrane physiology is the later Nernst relation for a monovalent ion.↩ 1↩ 2
- Stephen H. Wright, “Generation of Resting Membrane Potential,” Advances in Physiology Education 28, no. 4 (2004): 139–142.↩ 1↩ 2↩ 3↩ 4
- Radek Martinek et al., “Advanced Bioelectrical Signal Processing Methods: Past, Present and Future Approach—Part I: Cardiac Signals,” Sensors 21, no. 15 (2021), Table 1, PMC8346990.↩ 1↩ 2↩ 3↩ 4↩ 5↩ 6↩ 7↩ 8
- Design World staff compilation of handbook amplitudes for ECG, EEG, EMG, and EOG after “Biopotentials and Electrophysiology Measurements,” 2019.↩ 1↩ 2↩ 3↩ 4↩ 5
- Asimina Kiourti and colleagues, review of biomagnetic sensing (magnetoencephalography, magnetocardiography, magnetomyography, magnetoneurography), IEEE Open Journal of Antennas and Propagation (author accepted manuscript, 2023), Table I.↩ 1↩ 2↩ 3↩ 4↩ 5↩ 6↩ 7↩ 8
- A systematic review of inner-speech models of auditory verbal hallucinations, Translational Psychiatry 11 (2021).↩ 1↩ 2↩ 3
- Joachim Gross et al., “Bioelectromagnetism in Human Brain Research: New Applications, New Questions,” Neuroscientist 29, no. 1 (2023): 62–77.↩ 1↩ 2↩ 3
- Wilfrid Rall, “Core Conductor Theory and Cable Properties of Neurons,” in Handbook of Physiology, sec. 1, vol. 1 (Bethesda, MD: American Physiological Society, 1977), 39–97.↩ 1
- Nima Dehghani et al., “Comparative Power Spectral Analysis of Simultaneous Electroencephalographic and Magnetoencephalographic Recordings in Humans Suggests Non-Resistive Extracellular Media,” Journal of Computational Neuroscience 29 (2010): 405–421.↩ 1
Bibliografía Chicago — redacción original
- Kandel, Eric R., John D. Koester, Sarah H. Mack, and Steven A. Siegelbaum, eds. Principles of Neural Science. 6th ed. New York: McGraw Hill, 2021.
- National Institute of Neurological Disorders and Stroke. “Brain Basics: Know Your Brain.” Accessed 19 September 2026. https://www.ninds.nih.gov/health-information/public-education/brain-basics/brain- basics-know-your-brain.
- Digital Marketing Company. DigitalMarketingCo.org house living-document contract.
- Hodgkin, A. L., and A. F. Huxley. “A Quantitative Description of Membrane Current and Its Application to Conduction and Excitation in Nerve.” Journal of Physiology 117, no. 4 (1952): 500–544.
- Goldman, David E. “Potential, Impedance, and Rectification in Membranes.” Journal of General Physiology 27, no. 1 (1943): 37–60.
- Hodgkin, A. L., and Bernhard Katz. “The Effect of Sodium Ions on the Electrical Activity of the Giant Axon of the Squid.” Journal of Physiology 108, no. 1 (1949): 37–77.
- Buzsáki, György, Costas A. Anastassiou, and Christof Koch. “The Origin of Extracellular Fields and Currents: EEG, ECoG, LFP and Spikes.” Nature Reviews Neuroscience 13, no. 6 (2012): 407–420.
- Berger, Hans. “Über das Elektrenkephalogramm des Menschen.” Archiv für Psychiatrie und Nervenkrankheiten 87 (1929): 527–570.
- Cohen, David. “Magnetoencephalography: Evidence of Magnetic Fields Produced by Alpha-Rhythm Currents.” Science 161, no. 3843 (1968): 784–786.
- Hämäläinen, Matti, Riitta Hari, Risto J. Ilmoniemi, Jukka Knuutila, and Olli V. Lounasmaa. “Magnetoencephalography—Theory, Instrumentation, and Applications to Noninvasive Studies of the Working Human Brain.” Reviews of Modern Physics 65, no. 2 (1993): 413–497.
- Baddeley, Alan D., and Graham Hitch. “Working Memory.” In The Psychology of Learning and Motivation, vol. 8, edited by Gordon H. Bower, 47–89. New York: Academic Press, 1974.
- Paulesu, Eraldo, Chris D. Frith, and Richard S. J. Frackowiak. “The Neural Correlates of the Verbal Component of Working Memory.” Nature 362 (1993): 342–345.
- Jack, Bradley N., et al. “Inner Speech Is Accompanied by a Temporally-Precise and Content-Specific Corollary Discharge.” NeuroImage 198 (2019).
- “A Corollary Discharge Circuit in Human Speech.” Proceedings of the National Academy of Sciences 121 (2024).
- Hammerschlag, Richard, et al. “Biofield Physiology: A Framework for an Emerging Discipline.” 2015.
- Galvani, Luigi. De viribus electricitatis in motu musculari commentarius. Bologna, 1791.
- Volta, Alessandro. Correspondence and pile experiments opposing a vitalistic reading of Galvani, 1790s.
- Lapicque, Louis. “Recherches quantitatives sur l’excitation électrique des nerfs traitée comme une polarisation.” Journal de Physiologie et de Pathologie Générale 9 (1907): 620–635.
- “A Color-Coded Graphical Guide to the Hodgkin and Huxley Papers.” Advances in Physiology Education 46, no. 4 (2022).
- Nernst, Walther. “Zur Kinetik der in Lösung befindlichen Körper.” Zeitschrift für physikalische Chemie 2 (1888): 613–637.
- Wright, Stephen H. “Generation of Resting Membrane Potential.” Advances in Physiology Education 28, no. 4 (2004): 139–142.
- Martinek, Radek, et al. “Advanced Bioelectrical Signal Processing Methods: Past, Present and Future Approach—Part I: Cardiac Signals.” Sensors 21, no. 15 (2021). PMC8346990.
- “What Is the Difference between an ECG, EEG, EMG and EOG?” Design World, 2019, after handbook biopotential tables.
- Kiourti, Asimina, and colleagues. Review of technologies used to sense bio-magnetic fields. IEEE Open Journal of Antennas and Propagation, author-accepted manuscript, 2023.
- Review and meta-analysis of inner-speech models of auditory verbal hallucinations. Translational Psychiatry 11 (2021).
- Gross, Joachim, et al. “Bioelectromagnetism in Human Brain Research: New Applications, New Questions.” Neuroscientist 29, no. 1 (2023): 62–77.
- Rall, Wilfrid. “Core Conductor Theory and Cable Properties of Neurons.” In Handbook of Physiology, section 1, volume 1, 39–97. Bethesda, MD: American Physiological Society, 1977.
- Dehghani, Nima, Claude Bédard, Sydney S. Cash, Eric Halgren, and Alain Destexhe. “Comparative Power Spectral Analysis of Simultaneous Electroencephalographic and Magnetoencephalographic Recordings in Humans Suggests Non-Resistive Extracellular Media.” Journal of Computational Neuroscience 29 (2010): 405–421.
Colofón de la fuente
Este informe está compuesto en WCA Compact Ivy 2.0, propiedad de Web Development Corporation, una corporación de Delaware fundada en 2012. El cuerpo usa el corte óptico Literata 18pt, compuesto a 10 pt con interlineado de 14.2 pt. Los títulos usan EB Garamond. Los elementos auxiliares usan Libre Franklin. Las citas se imprimen como notas Chicago al pie de cada página, en el orden de primera aparición WCA Ivy; una hoja de notas reunidas es una concordancia opcional. Las ecuaciones destacadas incluyen una tabla ITQE.
© 2012–2026 Web Development Corporation, una corporación de Delaware. El fin de año es un campo activo y se actualiza al abrirlo en un visor compatible con JavaScript.
Cita y enlaza este informe en https://digitalmarketingco.org/white-papers/bioelectric-circuits-human-central-nervous-system-wca-folio. Nombre de archivo: 2026-bioelectric-circuits-human-central-nervous-system-wca-folio.pdf.